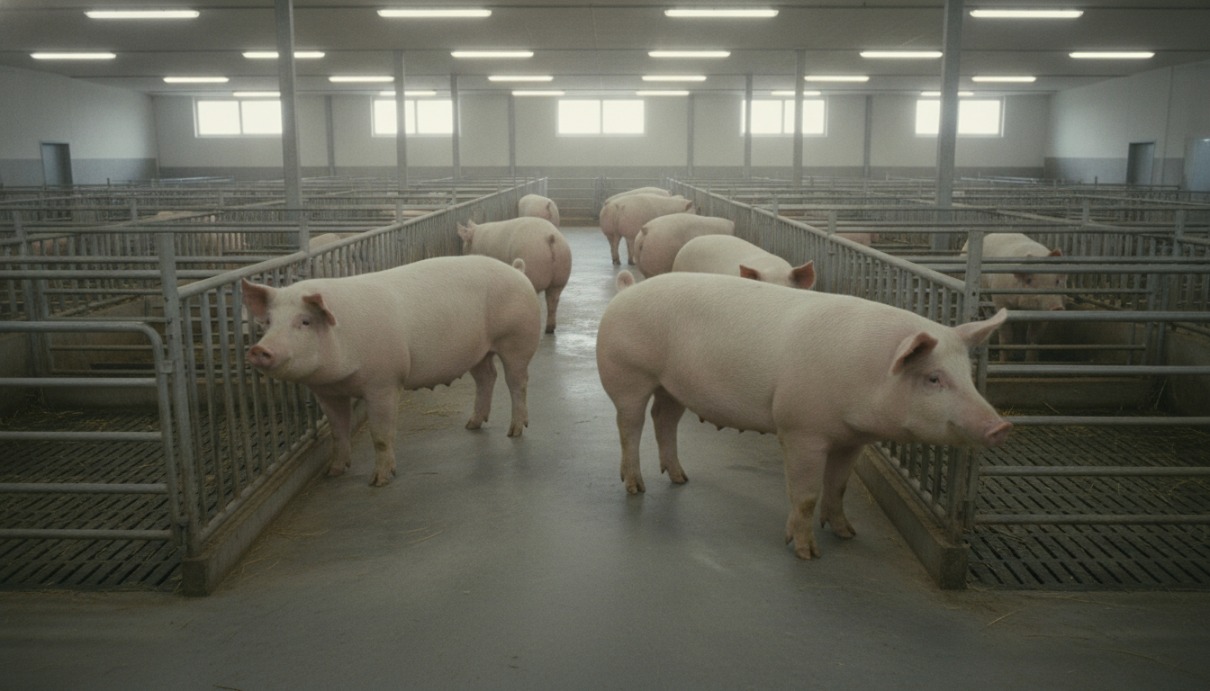
Математические модели, которые оценивают инбридинг в животноводстве, сильно расходятся в результатах при интенсивной геномной селекции. К такому выводу пришли исследователи из Норвежского университета естественных наук, Вагенингенского университета и селекционной компании Topigs Norsvin, изучив геномы 152 883 племенных свиней из материнской линии. Статью опубликовал журнал Genetics Selection Evolution.
Учёные проанализировали данные о животных, родившихся с 2014 по 2024 год, и сравнили три подхода к измерению родства. Модели, основанные на генетическом дрейфе, показали, что инбридинг растёт со скоростью до 1,9% за поколение. В то же время показатели, которые опираются на гомозиготность генома, росли лишь на 0,05–0,31% за поколение. Классический анализ родословных и метод, отслеживающий сцепленные участки хромосом, дали промежуточный результат – 0,21% и 0,27%.
В промышленном свиноводстве жёсткий отбор ради продуктивности постепенно сужает генетическое разнообразие и накапливает вредные рецессивные мутации. Чтобы стада не теряли жизнеспособность, селекционеры используют алгоритмы, которые оптимально подбирают пары, балансируя между быстрым улучшением признаков и ростом родства. Раньше такие расчёты строили только на бумажных родословных, но когда появилось массовое генотипирование, в практику вошли десятки новых формул. Как именно они ведут себя в условиях активного отбора, до сих пор оставалось неясным.
Исследователи проверили эти метрики на закрытой материнской линии, полная родословная которой охватывает 175 302 особи за 39 поколений начиная с 1970 года. Учёные знали предков для 98,5% поголовья, а интервал между поколениями составил 1,31 года. Животных тестировали на ДНК-чипах плотностью от 10 тыс. до 660 тыс. маркеров, а хряков-производителей отбирали по алгоритмам, которые сдерживают рост родства.
Оценки расходятся из-за того, что геномная селекция целенаправленно сдвигает частоты генов. Если при случайном скрещивании доля редких аллелей колеблется хаотично, то искусственный отбор систематически поднимает полезные редкие варианты к средним значениям. Математически это выразилось в отрицательной ковариации в минус 1,32 процентного пункта за поколение: дрейфовые метрики остро реагируют на такой сдвиг и завышают темпы инбридинга, тогда как общая гомозиготность генома растёт медленнее.
Внутри каждого подхода результаты тоже сильно зависели от настроек формул. Например, метод Ван Радена первого типа, который присваивает всем генетическим маркерам равный вес, показал к 2024 году средний коэффициент инбридинга 0,06. Второй вариант той же формулы усиливает влияние редких генетических вариантов: в итоге средний показатель вырос до 0,13, а у отдельных свиней достиг 0,89. Когда учёные подсчитывали длинные гомозиготные участки, решающую роль сыграла плотность чипов: на панели из 50 тыс. маркеров средний показатель составил 0,17, а на более подробной матрице в 660 тыс. маркеров упал до 0,06 из-за того, что длинные фрагменты дробились на короткие.
На уровне всей популяции среднее попарное родство животных стабильно росло все 11 лет и достигло 0,10–0,11 по родословным и сцеплению хромосом и 0,05–0,06 по дрейфовым оценкам. При этом индивидуальный инбридинг у свиней временно падал в 2018–2019 годах. Это объясняется тем, что технологи скорректировали схемы спаривания и избегали близких родственников: гомозиготность конкретного приплода снизилась, хотя родство в линии в целом продолжало расти. Генетический анализ подтвердил, что популяция оставалась единой и не распадалась на изолированные ветви.
Авторы работы заключили, что ни одна отдельно взятая математическая модель не отражает полной картины при современной геномной селекции. Показатели гомозиготности занижают то, как быстро дрейфуют гены, а формулы с акцентом на редкие аллели могут преувеличивать инбридинг. Чтобы стада не теряли редкие полезные варианты и не накапливали скрытые болезни, исследователи советуют племенным компаниям рассчитывать показатели одновременно всеми тремя способами, а при подборе пар опираться на дрейфовые матрицы с равным весом маркеров.